

甜荞(Fagopyrum esculentum Moench)是蓼科(Polygonaceae)荞麦属(Fagopyrum)非禾谷类兼食、药、观赏和土壤修复等多用途的经济作物,其籽粒富含赖氨酸、芦丁和抗氧化活性物等,具有很高的营养价值和保健功效,是一种值得加快开发的植物[1~3]。甜荞还具有生育期短、耐瘠薄、耐涝抗寒、耐旱等优点,在亚洲、欧洲、北美等地区栽培历史悠久,目前已被作为一种集营养保健、医药、蜜源和观赏等为一体的多用途作物而受到国际广泛重视[4~6]。然而,甜荞自然群体内长花柱短雄蕊(pin)型和短花柱长雄蕊(thrum)型植株按1∶1分离,异型花间仅等高的花药和柱头间授粉才能正常结实,自花和同型花间授粉不亲和,自然结实率和产量低[4]。寻找或创制雌雄蕊等长、亲和性好的的甜荞新种质,对实现甜荞不同单株间自由授粉和增产,加快其开发,均具有重要的理论意义和应用价值。
笔者在前期育种工作中,在甜荞品种‘北早生’群体中发现长花柱长雄蕊(long pistil and long stamens,lpls)突变体单株基础上,通过隔离传粉和单粒传粉获得了遗传性状稳定、亲和性好的lpls突变体株系。人工杂交和限制传粉显示:lpls突变体同型花间能正常授粉结实,同时其与一些甜荞品种pin型和thrum型花交杂都表现出很好的亲和性,使其成为甜荞杂交育种的优秀种质资源。育种实践证明,弄清作物自身花器官的形态特征和发育规律是开展杂交育种的前提和基础。本研究以甜荞lpls突变体为试验材料、通过石蜡切片技术,系统研究其花发育过程中大小孢子的发生与雌雄配子体的发育过程,为甜荞自交亲和性种质的创制和杂交育种提供珍贵的育种材料与积累资料。
1 材料与方法
1.1 实验材料
2019年9月初,挑选颗粒饱满的甜荞突变体lpls株系的籽粒播种于长江大学作物遗传育种研究所实验基地的塑胶花盆(21 cm×14 cm×20 cm),常规肥水管理。待花序分化和发育开始,每隔2 d取植株上发育分化最快的花序,立即FAA固定液(甲醛∶冰乙酸∶70%乙醇=1∶1∶18)固定,4℃冰箱保存备用。
1.2 实验方法
多数甜荞长花柱长雄蕊突变体lpls的主茎上第3片真叶开始发育时能看见花序分化,从植株主茎出现第3片真叶开始,随机选取60个植株挂牌标记,从中随机选取10株挂牌植株摘除顶端花序,立即FAA固定液固定。余下50株挂牌标记植株从主茎第4片真叶发育开始,主茎上每新增1片真叶,从中随机选取10株挂牌植株剥去第4片真叶叶腋中的花序FAA固定液固定,直至第4片真叶叶腋花序中的第1朵花开放。待所有挂牌植株开花后,分别从不同发育时期的10个花序中随机选取3个花序投入一个新的小瓶,用新的FAA固定液固定,抽气后用50%乙醇润洗3次,后依次经70%、85%、95%、100%乙醇梯度脱水,每级2 h;再经1/2乙醇+1/2二甲苯、100%二甲苯透明,每级 2 h;38℃条件下在纯二甲苯石蜡饱和溶液中浸没15 h,之后在68℃下用液体纯蜡置换二甲苯石蜡溶液,浸蜡12 h,每4 h换1次新蜡,石蜡包埋成型。用Leica RM2235石蜡切片机连续切片。切片厚度8 μm。用1%番红-0.1%固绿对染。加拿大中性树胶封片后在CAIKON RCK-40C显微镜下观察细胞结构并拍照。
2 结果与分析
2.1 甜荞长花柱长雄蕊突变体lpls花的形态与发育
甜荞长花柱长雄蕊突变体lpls播种4 d后种子萌发,幼苗2 d后子叶完全展开进入苗期,苗期约2 d后主茎第1片真叶开始发育,之后约每隔2 d,主茎上增加1片真叶。多数植株主茎上第3片真叶开始发育时能明显看见花序分化,且通常主茎上第4片真叶叶腋花序上发育最快的花芽最先开放,偶见第3片真叶叶腋的花序与第4片真叶叶腋的花序同时开花。
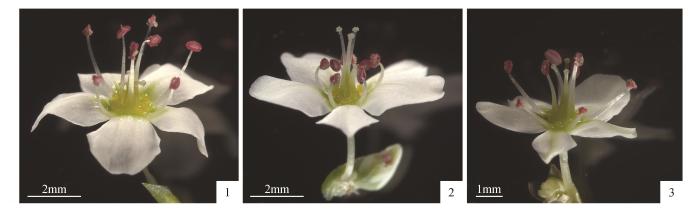
甜荞长花柱长雄蕊突变体lpls的柱头和花药基本等高,其柱头和花药的相对位置与pin型花和thrum型花明显不同。3种花型的花被片、密腺的数量、形态和着生方式无明显差异。
图版Ⅰ
图版Ⅰ
甜荞3种花型图
1.thrum型花(短花柱长雄蕊);2.pin型花(长花柱短雄蕊);3.lpls突变体花(长花柱长雄蕊)
PlateⅠ
Three flower types of F. esculentum Moench
1.thrum flower with short pistil and long stamen;2.pin flower with long pistil and short stamen;3.lpls flower with long pistil and long stamen
2.2 甜荞lpls的小孢子发生和雄配子体的发育
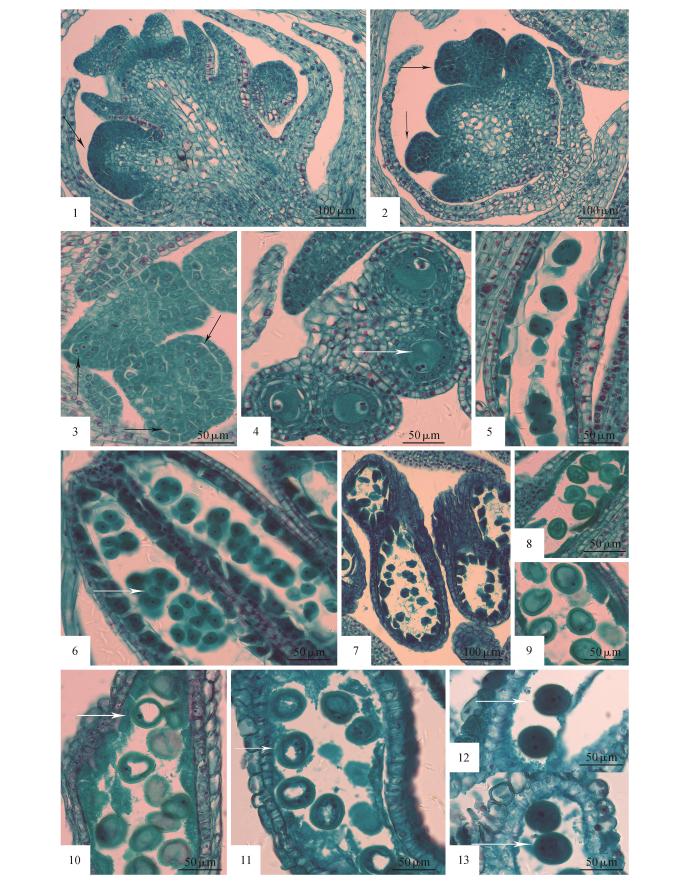
甜荞lpls花序随主茎上第3片真叶发育分化,可以看见托叶鞘中花序基部的花芽原基开始分化,出现半球形的花芽原基(图版Ⅱ:1),随后,花芽原基的两侧的细胞分裂加快,逐渐形成两个突起,发育为雄蕊原基(图版Ⅱ:2);雄蕊原基顶端着生一个近方形的花药,近方形的幼嫩的花药外面由一层表皮细胞包裹,花药四个角隅处表皮下的细胞分裂较快,每个角隅的表皮下分化出孢原细胞,随后孢原细胞平周分裂为外层的周缘细胞和内层的造孢细胞,但同一花药每个角隅的孢原细胞分裂不同步(图版Ⅱ:3)。随着花粉囊壁的发育,周缘细胞经平周分裂形成3层细胞,紧接表皮层的外层药室内壁、中层和内层多核绒毡层,同时造孢细胞进一步发育为小孢子母细胞(图版Ⅱ:4)。当lpls主茎上第4片真叶开始发育时,可见第4片真叶腋花序上花芽雄蕊花药中的小孢子母细胞通过减数分裂形成四分体,同时药室内壁中中层和绒毡层细胞开始解体,仅留完整的药室内壁细胞(图版Ⅱ:5),甜荞lpls突变体植株的小孢子四分体的排列方式为四面体型,小孢子四分体中偶见双核小孢子(图版Ⅱ:6);在小孢子母细胞减数分裂形成四分体的过程中,中层逐渐消失,多核绒毡层开始解体为小孢子的发育提供营养,绒毡层细胞间出现明显间隙(图版Ⅱ:6);在花序上发育较快的花芽中,可见雄蕊花药中小孢子四分体的胼胝质溶解释放小出孢子,此时的小孢子为不规则的三角形(图版Ⅱ:7)。待主茎上第5片真叶开始发育时,可见第4片真叶叶腋花序上花芽雄蕊花药中的小孢子变大变圆细胞质液泡化(图版Ⅱ:8);在花序上发育较快的花芽中,小孢子细胞核被中央大液泡挤到细胞一侧,形成单核靠边期小孢子(图版Ⅱ:9)。当主茎上第6片真叶开始发育时,第4片真叶叶腋花序上花芽雄蕊花药中少数单核靠边期小孢子的细胞核进行有丝分裂形成二细胞型花粉(图版Ⅱ:10)。当主茎上第7片真叶开始发育时,第4片真叶腋花序上花芽雄蕊花药中少数小孢子细胞核再进行一次有丝分裂 ,形成三细胞型花粉粒(图版Ⅱ:11),在成熟的花粉囊中,可见花粉着色变深,细胞变大变圆,二细胞型花粉粒和三细胞型花粉粒同时存在,但多数为二细胞型花粉粒(图版Ⅱ:12~13)。
图版Ⅱ
图版Ⅱ
甜荞长花柱长雄蕊突变体lpls小孢子发生和雄配子体发育
1.花芽原基;2.雄蕊原基;3.孢原细胞平周分裂产生周缘细胞和造孢细胞;4.小孢子母细胞;5.小孢子母细胞减数分裂;6.小孢子四分体;7.小孢子四分体解体;8.单核早期小孢子;9.单核靠边期小孢子;10.小孢子有丝分裂;11~13.2-细胞花粉和3-细胞花粉
PlateⅡ
Microsporogenesis and development of male gametophyte in mutant buckwheat with long pistil and long stamen
1.Flower bud primordium;2.Stamen primordium;3.The archesporium is divided into a parietal cell and a sporogenous cell,by the periclinal division;4.Microsposporocytes;5.Meiosis period;6.Tetrad phase;7.Microspores released from tetrads;8.Early uninucleate microspore stage;9.Mononuclear microspore in nucleus located aside stage;10.Mitotic period;11-13.Two-celled pollens and three-celled pollens
2.3 甜荞lpls的大孢子发生和雌配子体的发育
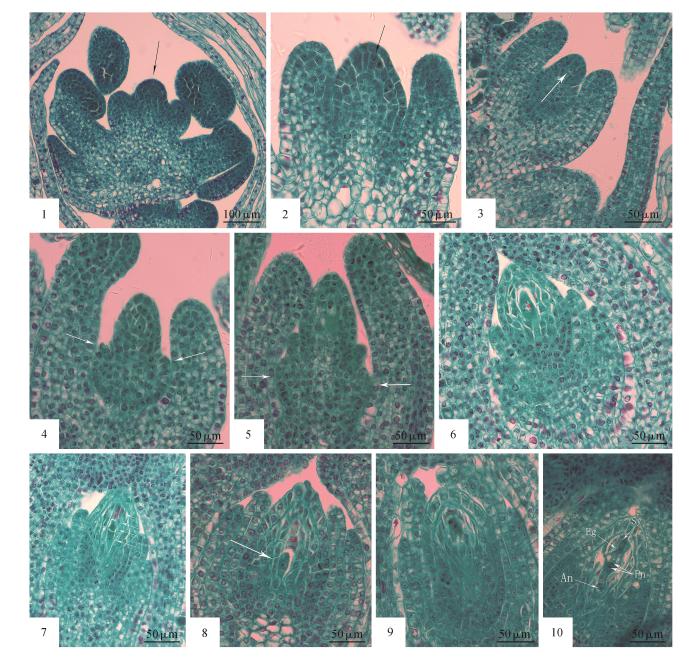
当甜荞lpls主茎上第3片真叶开始发育时,可观察到花序上花芽中出现雌蕊原基(图版II:2),随着雌蕊子房的发育,子房胎座上产生突起的珠心(图版Ⅲ:1)。随后,珠心表皮下分化出一个细胞体积较大、细胞质浓、细胞核大、生理活性旺盛的孢原细胞(图版Ⅲ:2)。孢原细胞经平周分裂后形成一个周缘细胞和一个造孢细胞(图版Ⅲ:3)。当lpls主茎上第4片真叶开始发育时,可见第4片真叶腋花序上花芽中内珠被开始发育,造孢细胞发育分化成大孢子母细胞,大孢子母细胞体积较周围细胞明显变大,并与周围细胞有一定间隙(图版Ⅲ:4)。待主茎第5片真叶开始发育时,可见第4片真叶叶腋花序上花芽中的大孢子母细胞开始减数分裂,外珠被开始分化(图版Ⅲ:5);随着大孢子母细胞减数分裂的进行,内珠被和外珠被逐渐向珠孔端延伸,同时内珠被延伸至直立胚珠的1/2处(图版Ⅲ:6)。随着主茎上第6片真叶开始发育,第4片真叶叶腋花序上花芽中的大孢子母细胞减数分裂发育形成直线型四分体(图版Ⅲ:7);当主茎第7片真叶开始发育时,第4片真叶叶腋花序上花芽中四分体合点端的一个细胞发育为功能大孢子,珠孔端的3个细胞退化,此时内、外珠被逐渐包裹胚珠(图版Ⅲ:8);随后,功能大孢子进行第一次有丝分裂形成二核胚囊,此时,内珠被延伸至珠孔端(图版Ⅲ:9);发育最快的花芽中二核胚囊再次进行2次有丝分裂形成8个游离的核,珠孔端和合点端各有1个核逐渐向中间靠拢形成中央细胞,珠孔端的卵细胞和紧邻的2个助细胞排成三角型,形成卵器,合点端的3个细胞成为反足细胞,此时外珠被延伸至珠孔端,胚囊发育成熟(图版Ⅲ:10)。
图版Ⅲ
图版Ⅲ
甜荞长花柱长雄蕊突变体lpls大孢子发生和雌配子体发育
1.胚珠原基;2.孢原细胞;3.造孢细胞;4.大孢子母细胞,内珠被开始分化;5.大孢子母细胞减数分裂,外珠被开始分化;6.大孢子母细胞减数分裂,内、外珠被向珠孔端延伸;7.线性四分体;8.功能大孢子;9.二核胚囊;10.成熟胚囊;Eg.卵细胞;Sy.助细胞;Pn.极核;An.反足细胞
PlateⅢ
Megasporogenesis and development of female gametophyte in mutant buckwheat with long pistil and long stamen
1.Ovule primordium;2.Archesporial cell;3.Sporogenous cell;4.Megasporocyte,appearance of inner integument;5.Meiosis phase,appearance of outer integument;6.Meiosis phase. Double layers integument gradually surrounded the nucellus;7.Four megaspores forming one liner tetrad;8.The chalazal megaspore was functional;9.Two-nucleated embryo sac;10.Mature embryo sac;Eg.Egg cell;Sy.Synergid;Pn.Polar nuclei;An.Antipodal cell
3 讨论
甜荞为蓼科荞麦属具异型花的特殊的异花传粉植物,其pin型和thrum型植株因雌雄蕊异位的特点导致自花、同型花间授粉不亲和[6]。本实验室筛选纯化甜荞长花柱长雄蕊突变体lpls具有与同型花、pin型和thrum型花间授粉均能正常结实的特性,成为开展甜荞杂交育种的珍贵材料。本研究观察到甜荞长花柱长雄蕊突变体lpls子房3心皮合生1室、基底胎座、直立胚珠,双珠被、厚珠心,大孢子四分体直线型排列,合点端为功能大孢子,典型的蓼型胚囊;花粉囊4室,小孢子母细胞减数分裂中胞质分裂为同时型,四面体型小孢子四分体,偶见四分体中出现双核小孢子,成熟花粉多为2细胞型,少量3细胞型。甜荞lpls的胚胎学特征与同属花药与柱头等高的自花授粉植物苦荞高度相似[7~8]。但苦荞成熟花粉全为2细胞型,甜荞lpls突变体中成熟花粉粒多为2细胞型,同时存在少量的3细胞型花粉粒。苦荞与甜荞lpls花药具4个小孢子囊、双珠被、厚珠心、功能大孢子位于合点端、胚囊发育为蓼型,是相对原始的性状[8~9]。表明荞麦属植物胚胎发育具有一定的保守性,但直立胚珠是相对进化的特征。但目前报道的石竹目(Caryophyllales)其他科植物的胚胎学特征则相对原始,但也会出现一些衍生性状。如核心石竹目商陆科(Phytolaccaceae)美洲商陆(Phytolacca Americana L.)及藜科(Chenopodiacea)中华北驼绒藜[Ceratoides arborescens(Losinsk.)Tsien.et C.G.Ma]都具花药4室、胚珠倒生、双珠被、厚珠心、合点端为功能大孢子、蓼型胚囊等典型原始胚胎学特征[9-11];而藜科另一园艺作物甜菜(Beta vulgaris L.)具有较多的原始胚胎学特征,但出现了曲生胚珠和3细胞型花粉的衍生性状[12~13]。同时也支持了蓼科荞麦属植物具基底胎座、单个直立胚珠的胚胎学特征是该目的衍生类群[14~16]。另一非核心石竹目植物柽柳(Tamarix chinensis Lour.)具双珠被、厚珠心、倒生胚珠等原始特征的同时,其同时还具胚珠多数、贝母型胚囊等衍生性状[17]。进一步说明石竹目植物演化的复杂性[7,15,18]。
随着主茎上第3片真叶的发育,花序上发育较快的花芽雄蕊花药中小孢子母细胞开始减数分裂形成四分体,而雌蕊胚珠中仅可观察到造孢细胞。随着主茎上第4片真叶的发育,当花药中小孢子四分体形成时,雌蕊胚珠中才出现大孢子母细胞,同时内珠被开始发育;随着小孢子四分体解体形成三角形小孢子,雌蕊胚囊仍停留在大孢子母细胞时期。随着主茎第5片真叶的发育,当4片真叶叶腋花序上花芽花药中单核靠边期小孢子出现时,大孢子母细胞开始减数分裂,此时胚珠外珠被开始发育。随着主茎第6片真叶的发育,当4片真叶叶腋花序上花芽花药中出现2细胞型花粉粒时,胚囊中可观察到直线型大孢四分体。随着主茎上第7片真叶的发育,2细胞型花粉形成,雌蕊胚囊中形成功能大孢子,随着主茎第7片真叶的发育,当4片真叶叶腋花序上花芽花药花粉发育成熟,细胞型花粉粒和三细胞型花粉粒同时存在,可见胚珠中功能大孢子迅速经过3次有丝分裂形成8核7细胞成熟胚囊。从甜荞lpls主茎上叶龄与大、小孢子发生和雌、雄配子体发育的进程来看,小孢子发生过程相对较快,但雄配子体的发育相对较慢;而大孢子发生过程相对较慢,但雌配子体的发育较快。在荆州地区秋播的甜荞生育期内,约2 d主茎上新增1片真叶,但主茎上真叶的发育和温度有明显的相关性,当日平均气温过低时,真叶发育会变缓甚至停止。本文为利用甜荞lpls突变株系开展杂交育种工作积累了一定的参考资料。但甜荞lpls雌雄蕊发育的进度与生育期内日平均气温的相关性仍有待进一步研究。
参考文献
FaesAP2B基因在甜荞长雌蕊长雄蕊突变体lpls的表达分析
[J].
Expression analysis of the FaesAP2B in mutant buckwheat with long pistil and long stamen
[J].
Phytochemical and pharmacological profiles of three Fagopyrum buckwheats
[J].
Global transcriptome analysis of Al-induced genes in an Al-accumulating species,common buckwheat(Fagopyrum esculentum Moench)
[J].
Isolation and characterization of the C-class MADS-box gene from the distylous pseudo-cereal Fagopyrum esculentum
[J].
Morphology of nectaries and biology of nectar production in the distylous species Fagopyrum esculentum
[J].
S-LOCUS EARLY FLOWERING 3 is exclusively present in the genomes of short-styled buckwheat plants that exhibit heteromorphic self-incompatibility
[J].
Transitions from distyly to homostyly are associated with floral evolution in the buckwheat genus(Fagopyrum)
[J].
九江苦荞大小孢子发生与雌雄配子体发育观察
[J].
Observation of mega-and microsporogenesis and development of male and female gametophytes in Fagopyrum tataricum
[J].
植物胚胎学研究的新进展(续)
[J].
New Progress on plant embryology
[J].
入侵杂草美洲商陆大小孢子的形成和雌雄配子体的发育
[J].
The megasporogenesis and microsporogensis of invasive weeds Phytolacca americana and formation of its male and female gametophyte
[J].
华北驼绒藜大小孢子的发生及雌雄配子体发育过程的解剖学研究
[J].
Megasporogenesis,microsporogenesis and development of male and female gametophytes in Ceratoides arborescens
[J].
甜菜大、小孢子发生与雌、雄配子体发育
[J].
Megasporogenesis and Mcrosporogenesis and the development of their female and male gametophyte in sugar beet
[J].
栽培甜菜大孢子发生的超微结构
[J].
Ultrastructure of megasporogenesis in Beta vulgaris
[J].
中国被子植物科属概览:依据APG Ⅲ系统
[J].
Families and genera of Chinese angiosperms:a synoptic classification based on APG Ⅲ
[J].
Phylogeny of the caryophyllales sensu lato:revisiting hypotheses on pollination biology and perianth differentiation in the core caryophyllales
[J].
An update of the angiosperm phylogeny group classification for the orders and families of flowering plants:APG Ⅳ
[J].
柽柳大、小孢子发生和雌、雄配子体发育的观察
[J].
Observations on megasporogenesis,microsporogenesis and development of female and male gametophytes of Tamarix chinensis(Tamaricaceace)
[J].
‘Living stones’ reveal alternative petal identity programs within the core eudicots
[J].


